

На протяжение всей жизни человеку приходится учить множество новых для него навыков. Этот процесс может быть как непроизвольным, так и контролируемым. Освоение новой технологии, смена места работы, желание выучить новый язык или даже танец — все эти сценарии требуют усилий для закрепления получаемых знаний, то есть навыков. С возрастом данный процесс становится сложнее и медленнее, а эффективность успешного закрепления навыка может снижаться даже при повторяющемся его закреплении. Сейчас можно встретить множество средств, от пищевых добавок до медитации, которые должны стимулировать усваивание информации и работу мозга. Однако, к сожалению, большинство из них либо держаться исключительно на эффекте плацебо, либо не работают вообще. Ученые из Университета Тохоку (Япония) решили протестировать более прямой подход. В ходе своего исследования они установили, что стимуляция блуждающего нерва усиливает закрепление моторных навыков у мышей. Как ученые стимулировали нерв, насколько сильно это влияло на процесс обучения, и как полученные в ходе опытов данные могут помочь людям? Ответы на эти вопросы мы найдем в докладе ученых.
Основа исследования
Химическая, ионная и молекулярная среда мозга играет решающую роль в формировании работы нейронных цепей. В зависимости от локальных условий в мозге одни и те же входные сигналы могут приводить к различным выходным результатам, а вероятность индукции синаптической пластичности (метапластичность) также может динамически регулироваться, что обусловливает значительную вариабельность эффективности обучения даже при, казалось бы, идентичных внешних условиях.
Такая локальная среда мозга, включая энергоснабжение и метаболическую поддержку, в значительной степени определяется не нейрональными элементами, такими как глиальные клетки и сосудистая сеть. Процессы обучения и памяти проявляются в изменениях функционирования нейронных цепей, возникающих вследствие зависящих от активности модификаций синаптической эффективности. В частности, на индукцию и стабилизацию долговременной потенциации и депрессии (LTP от long-term potentiation и LTD от long-term depression) — процессов, которые широко признаны ключевыми клеточными механизмами обучения, — может оказывать существенное влияние локальная среда мозга. Согласно результатам предыдущих исследований, кратковременное обучение преимущественно зависит от преходящих синаптических изменений, тогда как долговременное обучение опирается на синтез белков и структурную перестройку и тесно связано с энергетическим обменом. В этом контексте нейроваскулярное сопряжение (NVC от neurovascular coupling) регулирует доставку энергии для удовлетворения метаболических потребностей, возникающих при текущей активности нейронов. Важно отметить, что появляются данные, указывающие на то, что сосудистая динамика и метаболическая регуляция могут претерпевать скоординированные адаптивные изменения и связаны с индукцией синаптической пластичности в процессе обучения.
В последние годы ось «мозг — тело» стала рассматриваться как ключевой регулятор функций головного мозга. Было показано, что периферические интероцептивные сигналы влияют на поведение животных. Например, сигналы, поступающие в мозг от сердца и кишечника, связывают с состояниями, подобными тревоге и депрессии, у грызунов. Эти афферентные сигналы преимущественно конвергируют на блуждающем нерве и передаются в дорсальный комплекс блуждающего нерва — в частности, в ядро одиночного пути (NTS jn nucleus of the solitary tract), — после чего распространяются по обширным областям мозга по принципу «снизу вверх». Данный путь задействует различные нейромодуляторные системы, включая холинергическую, норадренергическую, серотонинергическую и дофаминергическую передачу сигналов. Подобная афферентная активность, опосредованная блуждающим нервом, может изменять локальную среду в мозге, тем самым модулируя функционирование нейронных цепей и метапластичность.
Электрическая стимуляция блуждающего нерва позволяет искусственно задействовать существующий в организме путь передачи сигналов от периферии к центральным структурам, влияющий на работу головного мозга. Такая стимуляция блуждающего нерва (VNS jn vagus nerve stimulation) является признанным методом лечения ряда неврологических заболеваний, в частности резистентной к терапии эпилепсии, однако точные физиологические механизмы, лежащие в основе ее воздействия на мозг, изучены не до конца. Тем не менее, благодаря своей терапевтической эффективности при различных неврологических расстройствах, VNS все чаще рассматривается как уникальный экспериментальный инструмент для исследования периферической модуляции функций центральной нервной системы. В то же время остается практически неизученным вопрос о том, связаны ли периферические афферентные сигналы (например, возникающие при VNS) с сопутствующими изменениями сосудистой динамики.
В рассматриваемом нами сегодня труде ученые разработали специализированный манжетный электрод, позволяющий проводить хроническую стимуляцию блуждающего нерва (VNS) у свободно передвигающихся мышей, чтобы напрямую проверить, влияют ли афферентные сигналы, генерируемые VNS, на эффективность обучения и локальную среду головного мозга. Многократные тренировки горизонтального оптокинетического рефлекса (HOKR от horizontal optokinetic response) способствуют улучшению глазодвигательной функции за счет синаптической пластичности и перестройки нейронных цепей в мозжечке. Известно, что ключевую роль в этом виде обучения играет клочок (флоккулюс) мозжечка. Однако вопрос о том, сохраняется ли долговременная память локализованной в пределах флоккулюса или со временем перераспределяется между различными отделами мозга, остается предметом дискуссий.
Ученые обнаружили, что проведение VNS сразу после тренировки HOKR избирательно усиливало долговременный эффект обучения в течение нескольких дней, что указывает на роль этой процедуры в консолидации памяти. Кроме того, сочетание метода волоконной фотометрии in vivo и визуализации сосудов показало, что одиночная серия импульсов VNS вызывает кратковременные изменения объема локального кровотока во флоккулюсе мозжечка, проявляющиеся в виде вазоконстрикции и вазодилатации. Поскольку серии импульсов VNS подавались каждые 40 секунд в течение 20 минут после тренировки HOKR, многократная стимуляция приводила к возникновению колебательной динамики сосудов (далее именуемой «сосудистыми осцилляциями»). Эти колебания могут быть связаны с усилением кровотока и более эффективной доставкой энергетических субстратов. Примечательно, что амплитуда данных сосудистых осцилляций демонстрировала сильную корреляцию со степенью улучшения долговременных результатов обучения.
На основании полученных данных ученые предполагают, что периферические афферентные сигналы, инициируемые стимуляцией блуждающего нерва (VNS), связаны с изменениями цереброваскулярной динамики и последующей метаболической регуляцией, что может способствовать процессам долговременного обучения. Однако в данном исследовании не была установлена прямая причинно-следственная связь между сосудистыми осцилляциями и улучшением способности к обучению. Эти результаты создают основу для понимания того, как периферическая стимуляция модифицирует условия функционирования головного мозга, и могут помочь в оптимизации терапевтических стратегий, основанных на VNS.
Результаты исследования
Платформа для стимуляции блуждающего нерва у мышей in vivo
Изображение №1
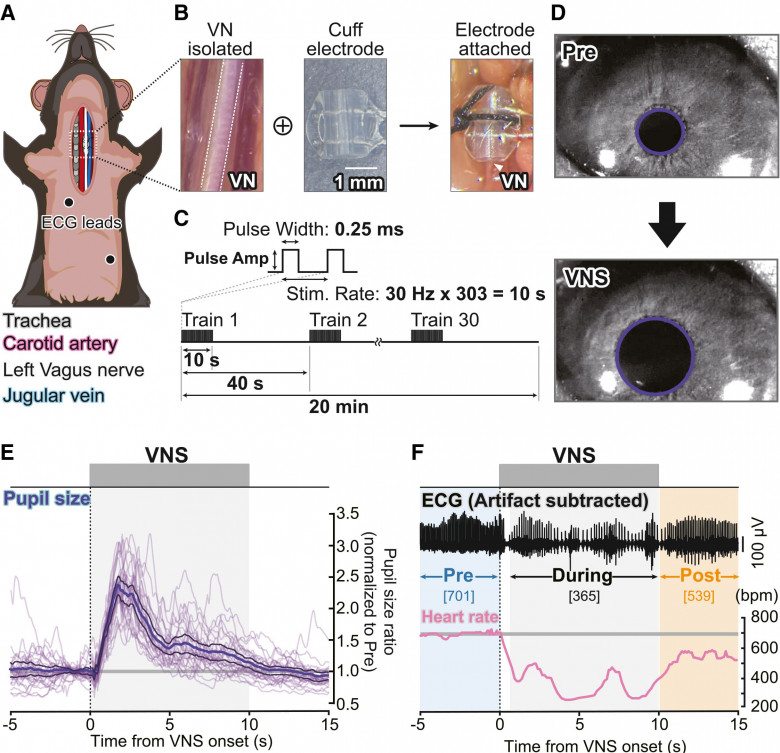
Для изучения роли стимуляции блуждающего нерва (VNS) в регуляции функций головного мозга ученые воздействовали на левый шейный отдел блуждающего нерва, используя специально разработанный манжетный электрод, который позволял проводить контролируемую стимуляцию у свободно передвигающихся мышей в течение длительного времени (1A и 1B). Поскольку физиологические эффекты VNS могут варьироваться в зависимости от вида подопытных животных, конструкции манжетного электрода, характеристик самого электрода и конкретного сочетания параметров стимуляции, ученые выбрали протокол, опираясь на диапазоны параметров, часто применяемые в предыдущих исследованиях VNS на грызунах, а также на результаты предварительной оптимизации. Стимуляция осуществлялась сериями монофазных импульсов постоянного тока (сила тока 1.5 мА для протокола, представленного на 1C; длительность импульса 250 мкс) с частотой 30 Гц в течение 10 секунд. Этот цикл повторялся 30 раз с интервалом 40 секунд (1C). Функциональность имплантированных электродов подтверждалась наблюдаемыми при стимуляции расширением зрачка и снижением частоты сердечных сокращений, что свидетельствовало об эффективной активации блуждающего нерва.
Ранее сообщалось, что расширение зрачка, вызванное стимуляцией блуждающего нерва, является физиологическим признаком активации этого нерва. В настоящем исследовании VNS, осуществляемая через имплантированный манжетный электрод, неизменно вызывала кратковременное расширение зрачка в ходе стимуляции (1D и 1E). При многократном предъявлении серий стимулов с интервалом 40 секунд нормализованная амплитуда расширения зрачка оставалась стабильной на протяжении всех попыток. Не было выявлено значимых различий между средними нормализованными амплитудами для первых и последних пяти серий стимуляции Далее оценивались временные характеристики расширения зрачка, вызванного VNS. Латентный период до достижения максимального расширения (3.28 ± 0.38 с) и латентный период до достижения максимального ускорения (499.56 ± 21.24 мс) соответствовали данным предыдущих исследований. Кроме того, исходный размер зрачка оставался стабильным после многократной VNS. Значимого дрейфа показателей обнаружено не было.
Снижение частоты сердечных сокращений (HR от heart rate), вызванное стимуляцией блуждающего нерва, также описывается как периферический физиологический признак активации этого нерва. В настоящем исследовании VNS вызывала кратковременное снижение HR в период стимуляции, за которым следовал устойчивый эффект после ее завершения (1F). Абсолютные значения HR выражались в ударах в минуту (уд./мин), тогда как нормализованные изменения HR представлялись в виде отношения текущей HR к исходному уровню (базовому значению) до начала VNS. Поскольку артефакты стимуляции создавали помехи при регистрации ЭКГ, для получения записей ЭКГ без артефактов использовались специально разработанные алгоритмы вычитания помех и детектирования HR. Первая серия импульсов VNS вызвала значительное снижение нормализованного показателя HR (до VNS по сравнению с периодом стимуляции: 1.000 против 0.7085 ± 0.0410). При анализе серии повторных стимуляций VNS было выявлено значимое различие между средними изменениями HR для первых пяти и последних пяти серий. В отличие от отсутствия дрейфа исходного уровня размера зрачка, исходный уровень HR продемонстрировал значимый дрейф после повторных стимуляций VNS. Более того, исходный уровень HR отрицательно коррелировал с соответствующим показателем отношения HR.
Стимуляция блуждающего нерва способствует улучшению результатов обучения в долгосрочной перспективе
Используя данную платформу для стимуляции блуждающего нерва in vivo, ученые далее исследовали, влияет ли VNS на эффективность обучения. Опираясь на данные о том, что пластичность коры головного мозга зависит от интенсивности VNS, а размер зрачка отражает нейромодуляторную активность в центральных отделах мозга, ученые сначала оценили взаимосвязь между интенсивностью VNS и расширением зрачка. Повышение интенсивности VNS приводило к прогрессирующему увеличению диаметра зрачка. В предыдущих исследованиях высказывалось предположение, что изменение полярности стимуляции позволяет избирательно активировать афферентные или эфферентные волокна блуждающего нерва, тем самым повышая эффективность воздействия и минимизируя нецелевые эффекты. Однако, вопреки этим данным, полярность стимуляции не оказывала существенного влияния на расширение зрачка при различных уровнях интенсивности. На основании этих результатов и данных предыдущих исследований для последующих экспериментов были выбраны режимы стимуляции средней и высокой интенсивности (0.6 и 1.5 мА) с расположением катода в краниальном направлении.
Изображение №2
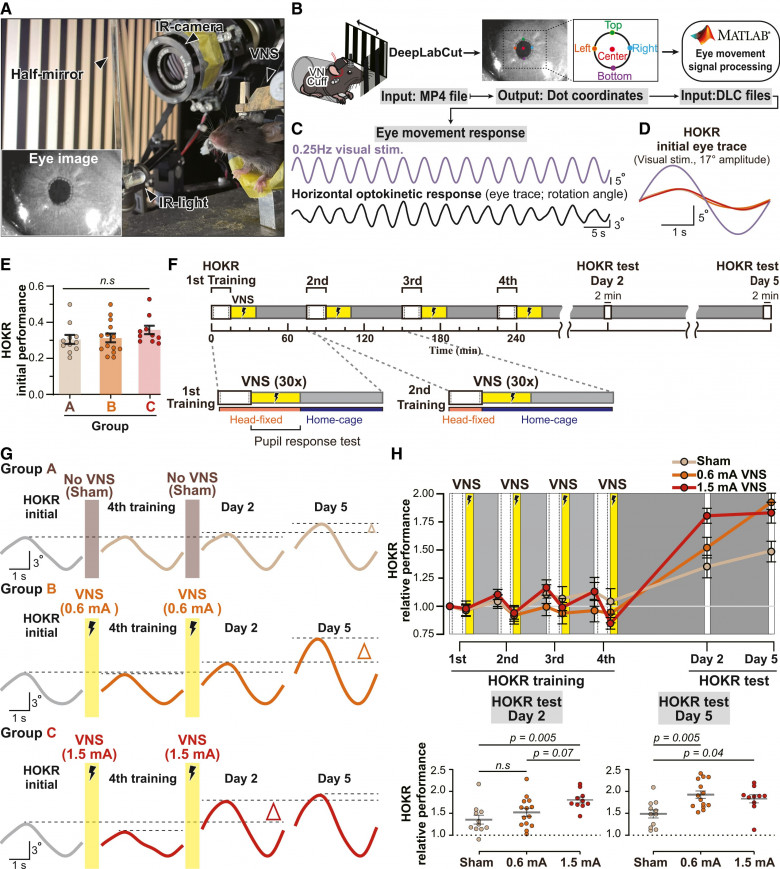
Далее ученые использовали парадигму моторного обучения на основе горизонтального оптокинетического рефлекса (HOKR), зависящего от функции мозжечка, чтобы выяснить, способствует ли стимуляция блуждающего нерва (VNS) процессу обучения. Визуальная демонстрация вертикальных полос, совершающих горизонтальные колебания, вызывала HOKR у мышей с зафиксированной головой. Движения глаз регистрировались и анализировались для получения графиков изменения угла поворота глаз (2A–2C). В начале обучения движения глаз слабо соответствовали визуальному стимулу, что приводило к меньшей амплитуде их поворота (2D). Исходная эффективность HOKR определялась как отношение амплитуды движений глаз к амплитуде стимула в течение первых 3 минут первой тренировочной сессии. На этом этапе все мыши проходили одинаковые экспериментальные процедуры до момента их распределения по группам. Не было выявлено значимых различий в исходных показателях HOKR между животными, которых впоследствии распределили в три экспериментальные группы (без VNS, VNS 0.6 мА и VNS 1.5 мА; 2E). Это подтверждает, что все группы начинали с сопоставимых исходных показателей.
В рамках парадигмы распределенного обучения мыши проходили четыре тренировочные сессии (по 15 минут каждая) в первый день с интервалами в 1 час. Увеличение амплитуды движений глаз в ходе одной сессии классифицировалось как «онлайн обучение», а прирост показателей между сессиями — как «офлайн обучение». Прирост, наблюдаемый в период от четвертой тренировочной сессии до контрольных тестов, проводившихся на 2-й и 5-й дни, определялся как «позднее офлайн обучение».
После каждой тренировки в группах B (0.6 мА) и C (1.5 мА) немедленно подавалась VNS, тогда как в группе A стимуляция не применялась (имитация). В группах VNS (группы B и C) ученые контролировали расширение зрачков для подтверждения эффективной стимуляции (2F), а мышей, не соответствующих критериям проверки, исключали. У контрольных животных, хотя стимуляция не проводилась в рамках парадигмы обучения HOKR, функциональность манжетного электрода была подтверждена после теста на 5-й день посредством расширения зрачка, вызванного VNS, а животные, не прошедшие валидацию, были исключены. После второго, третьего и четвертого сеансов обучения мышей освобождали от фиксации головы сразу после тренировки HOKR, а в группах VNS вводили VNS сразу после этого, пока животные свободно двигались.
Модель со смешанными эффектами (метод REML), в которой фиксированные эффекты оценивались с помощью тестов III типа, выявила значимое взаимодействие между сессией обучения и условиями стимуляции блуждающего нерва (2H). В группе имитации стимуляции в первый день обучения значимого прогресса не наблюдалось — ни в ходе самой тренировки (онлайн фаза), ни в последующий период (офлайн фаза). Тем не менее на 2-й и 5-й дни проявился эффект обучения в поздней офлайн фазе, хотя эти результаты не полностью согласуются с данными, представленными в предыдущих исследованиях.
Аналогичное отсутствие эффекта было отмечено в первый день и в группах, получавших VNS, что указывает на то, что стимуляция не влияла на обучение ни в ходе тренировки, ни на раннем этапе офлайн фазы. В то же время апостериорный тест Тьюки для множественных сравнений показал, что VNS избирательно улучшала обучение HOKR в поздней офлайн фазе, причем этот эффект зависел от интенсивности стимуляции и проявлялся в разное время: на 2-й день — в группе C, а на 5-й день — в группах B и C.
VNS вызывает динамику объема крови в клочке мозжечка
Изображение №3
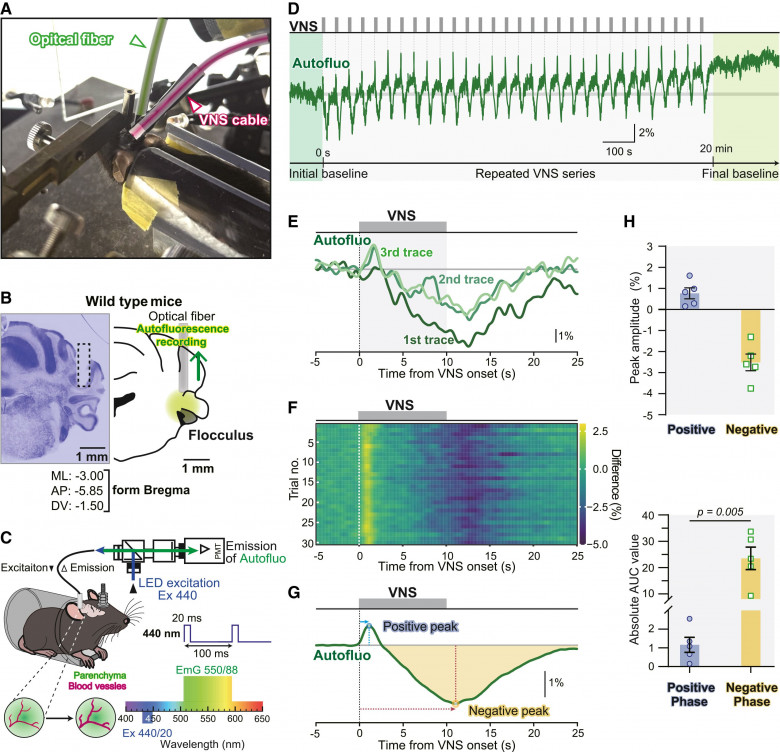
Для изучения сосудистой динамики во время стимуляции блуждающего нерва (VNS) ученые визуализировали колебания объема крови в ткани мозга (BBV от brain blood volume) в области клочка мозжечка — структуре, играющей ключевую роль в обучении в рамках HOKR. Ученые использовали метод «теневой» визуализации на основе аутофлуоресценции: сигналы регистрируются в паренхиме мозга, но их интенсивность снижается внутри кровеносных сосудов из-за поглощения света гемоглобином (3A–3C). Ранее этот подход был валидирован с помощью волоконной фотометрии. При использовании данного метода отдельные серии импульсов VNS вызывали кратковременные колебания интенсивности аутофлуоресценции вблизи кончика оптического волокна, имплантированного в клочок мозжечка. Эти реакции отличались высокой воспроизводимостью при многократном повторении стимуляции (3D–3F). Ответы имели двухфазную динамику: быстрое положительное отклонение, за которым следовало отсроченное отрицательное отклонение (3G). Количественный анализ показал, что амплитуда отрицательного отклонения была значительно больше амплитуды положительного (3H).
Для более детальной характеристики этих ответов ученые проанализировали динамику отдельных стимуляций в ходе серии повторных воздействий VNS. Наибольшая пиковая амплитуда отрицательного отклонения наблюдалась во время начальных серий VNS, однако значимых различий между средними амплитудами первых пяти и последних пяти серий выявлено не было. Напротив, латентный период пика отрицательного отклонения достоверно увеличивался по мере повторения стимуляции. Кроме того, у разных мышей при одинаковой интенсивности стимуляции величина отрицательного отклонения была отрицательно коррелирована с латентным периодом пика.
Прямая визуализация динамики объема сосудов мозжечка, вызванной VNS
Изображение №4
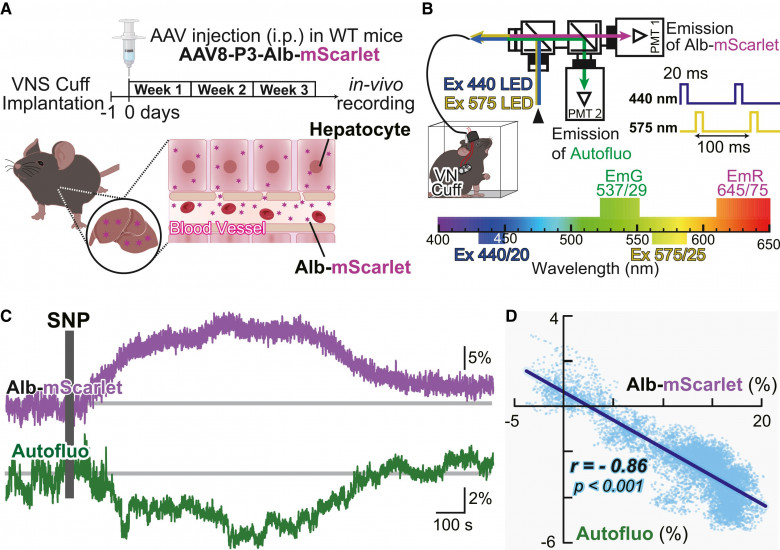
Для прямой визуализации динамики объема сосудов ученые обеспечили экспрессию химерного белка Alb-mScarlet (альбумин, соединенный с флуоресцентным белком mScarlet) в печени с помощью трансдукции аденоассоциированным вирусом. Этот химерный белок секретировался в кровоток и циркулировал в организме, позволяя визуализировать объем сосудов методом флуоресценции (4A). Была создана система регистрации с двумя каналами флуоресценции для одновременного отслеживания аутофлуоресценции и сигнала Alb-mScarlet при последовательном возбуждении на длинах волн 440 нм и 575 нм соответственно (4B). После подкожного введения вазодилататора нитропруссида натрия (SNP от sodium nitroprusside) интенсивность флуоресценции Alb-mScarlet возрастала, тогда как интенсивность аутофлуоресценции снижалась, что свидетельствовало о выраженной обратной зависимости между этими двумя сигналами (4C и 4D).
Изображение №5
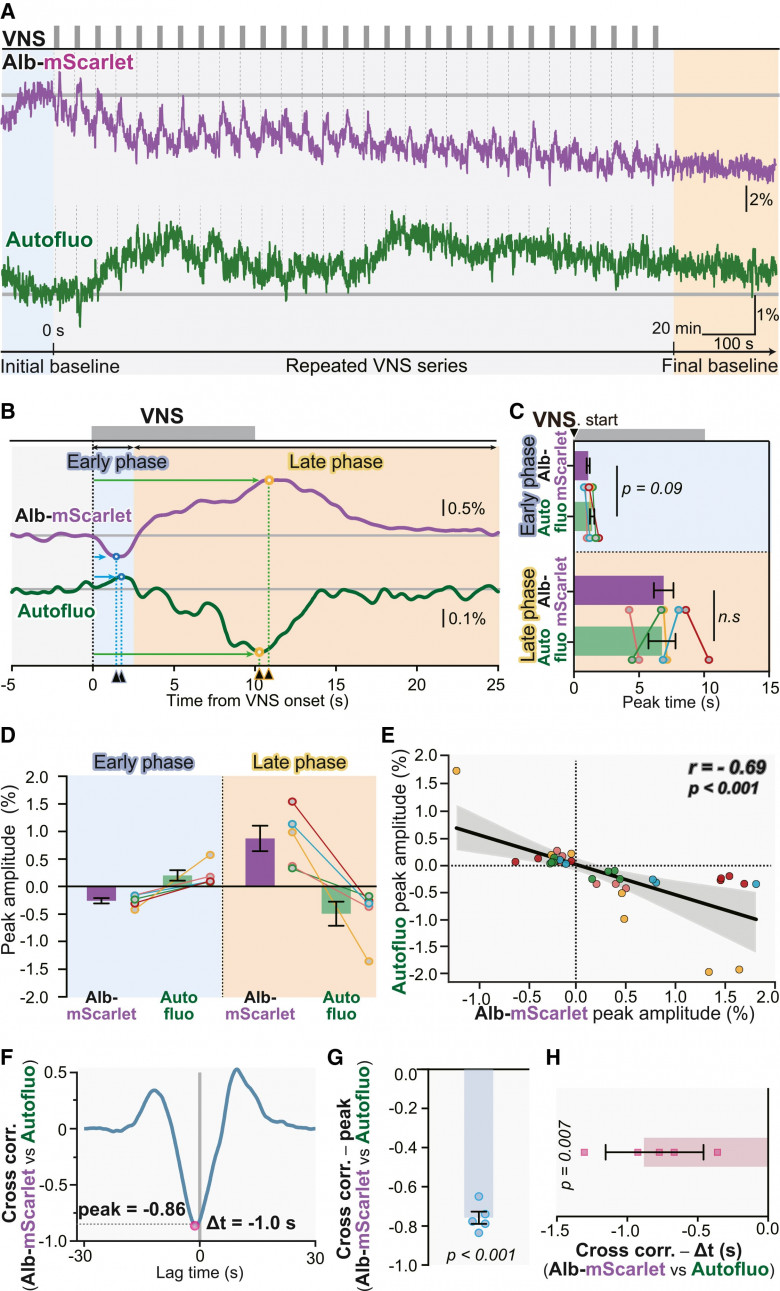
В ходе VNS каждая попытка вызывала двухфазные колебания флуоресценции AlbmScarlet, состоящие из первоначального отрицательного отклонения, за которым следовало отсроченное положительное отклонение. Эта динамика была в значительной степени противоположна сигналам аутофлуоресценции, однако не являлась их зеркальным отражением: наблюдались небольшие временные сдвиги между соответствующими пиками как на ранней, так и на поздней стадиях VNS (5A–5C). Была выявлена устойчивая взаимосвязь между амплитудами сигналов AlbmScarlet и аутофлуоресценции, выражающаяся в значимой отрицательной корреляции между их пиковыми значениями (5D и 5E). Увеличение интенсивности VNS приводило к более выраженным отклонениям обоих сигналов, при этом на более высоких уровнях интенсивности наблюдался эффект насыщения. Кроме того, стимуляция при расположении катода в краниальном направлении вызывала более значительные отклонения, чем при расположении катода в каудальном направлении.
Перекрестно-корреляционный анализ выявил выраженный отрицательный пик между сигналами Alb-mScarlet и автофлуоресценции со сдвигом по времени (лагом) приблизительно −1.0 с (5F). Эта закономерность наблюдалась у всех исследованных мышей (5G и 5H). Анализ отдельных попыток показал стабильные характеристики перекрестной корреляции при многократном применении VNS, при этом значимых различий между начальными и поздними попытками выявлено не было.
Анализ исходных уровней выявил значимое кумулятивное увеличение аутофлуоресценции после многократной стимуляции, тогда как флуоресценция Alb-mScarlet значимых изменений не продемонстрировала. Соответственно, значимой корреляции между дрейфом исходных уровней этих двух сигналов обнаружено не было.
Полученные результаты показывают, что VNS вызывает в мозжечке скоординированные и упорядоченные во времени изменения объема сосудов. Примечательно, что тонкие различия между сигналами от белка AlbmScarlet и сигналами аутофлуоресценции, включая временные задержки и дрейф базовой линии, могут быть обусловлены не только эффектами «сосудистого затенения», но и дополнительным вкладом изменений концентрации метаболически значимых флуоресцирующих компонентов, таких как флавины.
Колебания объема сосудов после тренировки связаны с результатами долгосрочного обучения в рамках HOKR
Изображение №6
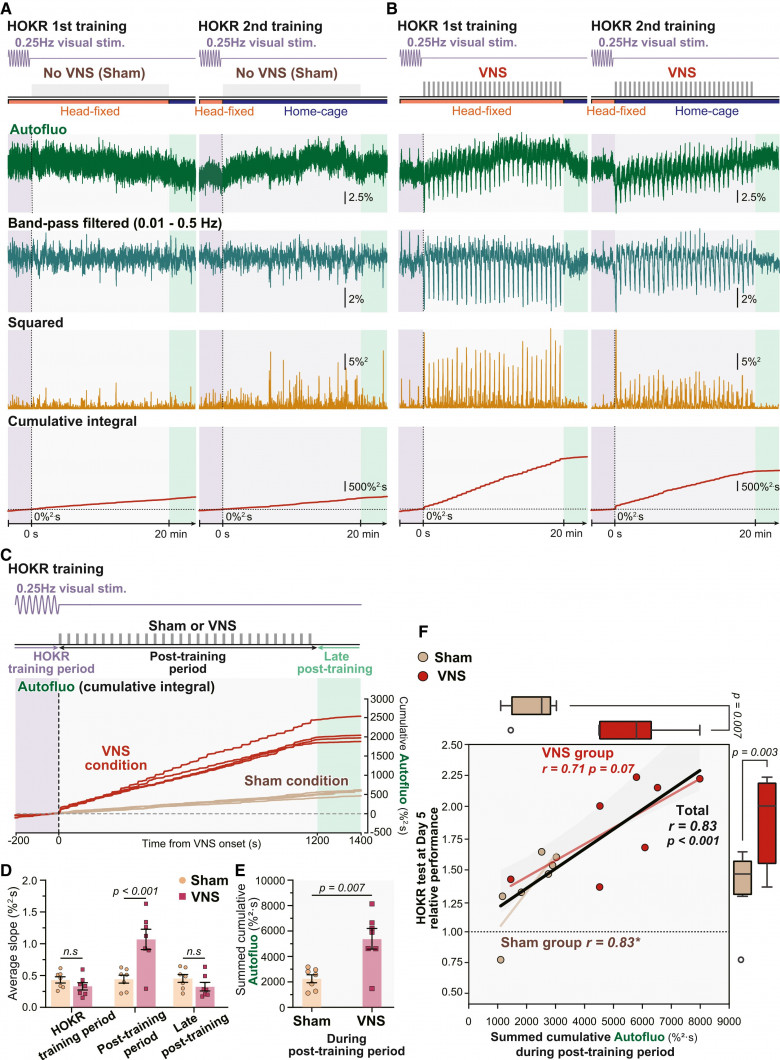
Для количественной оценки колебаний объема сосудов после тренировки HOKR записи интенсивности аутофлуоресценции, полученные в области клочка мозжечка, подвергались полосовой фильтрации (0.01–0.5 Гц), возведению в квадрат и кумулятивному интегрированию, что позволило оценить амплитуду сосудистых колебаний (6A и 6B). Флуктуации аутофлуоресценции наблюдались как в контрольной группе, так и в группе VNS. Однако при многократной стимуляции VNS интенсивность этих флуктуаций возрастала более выраженно, что приводило к увеличению общей амплитуды колебательной активности (6C). Средний наклон кривой в период после тренировки был значимо выше в группе VNS по сравнению с контрольной группой. Напротив, на более позднем этапе после тренировки значимых различий между группами выявлено не было (6D). Аналогичным образом, суммарная амплитуда сосудистых колебаний на протяжении первых четырех сессий после тренировки была значимо выше в группе VNS, чем в контрольной группе (6E).
Для оценки взаимосвязи между сосудистыми осцилляциями и результатами обучения был проведен анализ зависимости между суммарной амплитудой осцилляций и показателями HOKR на 5-й день. В группе с имитацией стимуляции была выявлена значимая положительная корреляция, что указывает на возможную связь между естественными сосудистыми осцилляциями и долговременной пластичностью. Положительная тенденция также наблюдалась в группе VNS, а при объединении данных обеих групп была обнаружена более выраженная положительная корреляция (6F). В соответствии с этими результатами, показатели HOKR на 5-й день были значимо выше в группе VNS (1.5 мА) по сравнению с группой имитации стимуляции. Полученные данные свидетельствуют о том, что амплитуда сосудистых осцилляций, в том числе усиленных в результате VNS, тесно связана с результатами долговременного обучения.
Для более детального ознакомления с нюансами исследования рекомендую заглянуть в доклад ученых и дополнительные материалы к нему.
Эпилог
В рассмотренном нами сегодня труде ученые провели практические испытания по стимулированию блуждающего нерва в рамках проверки потенциального положительного влияния данного процесса на фиксацию новых навыков.
Процесс обучения может быть весьма долгим и сложным, что зависит от множества внешних и внутренних факторов. К последним может относиться то, в каком состоянии находится мозг в процессе обучения.
Процесс обучения неразрывно связан с работой всего организма. Внутренние органы постоянно передают информацию в мозг через блуждающий нерв — один из важнейших каналов связи в нервной системе. Авторы исследования, изучающие нейронные сети мозга, показали на примере мышей, что стимуляция этого нерва после тренировки способствует более прочному закреплению двигательных навыков. Эти результаты указывают на то, что сигналы, поступающие в мозг от других частей тела, играют важную, но ранее недооцененную роль в формировании долгосрочных навыков.
Блуждающий нерв служит своего рода «информационной магистралью» между мозгом и телом. По нему передаются сигналы от внутренних органов к мозгу, а в обратном направлении — команды от мозга к органам. Ученые могут воздействовать на этот путь с помощью стимуляции блуждающего нерва (VNS) — метода, который уже одобрен для клинического применения при лечении ряда заболеваний.
Ранее VNS рассматривалась преимущественно как способ нейромодуляции, изменяющий активность нейромедиаторных систем. Однако новое исследование предполагает наличие еще одного важного механизма: ритмических изменений в кровеносных сосудах головного мозга.
Чтобы проверить эту гипотезу, исследователи разработали миниатюрный электрод, который крепился к левому шейному отделу блуждающего нерва у мышей. Затем они применяли VNS в процессе обучения мышей горизонтальному оптокинетическому рефлексу (HOKR) — задаче, связанной с работой мозжечка, в ходе которой животные учились лучше следить за движущимися визуальными полосами. Этот рефлекс схож с автоматическими движениями глаз, которые совершает человек, стоя на платформе и наблюдая за проезжающим мимо поездом.
Исследователи проводили VNS не во время самого процесса обучения, а после каждой тренировочной сессии. В ходе самих занятий стимуляция не приводила к немедленному улучшению результатов. Положительный эффект становился заметен позже. В последующие дни у мышей, получавших стимуляцию блуждающего нерва, наблюдалось более устойчивое усвоение навыка.
Далее исследователи изучили изменения внутри мозга, которые могли бы сопровождать улучшение процесса обучения. Они измеряли динамику объема крови вблизи клочка мозжечка — области, участвующей в обучении рефлексу HOKR. С помощью метода волоконной фотометрии ученые обнаружили, что однократное применение VNS вызывает двухфазную сосудистую реакцию: сначала объем крови в данной области кратковременно снижается, а затем, после некоторой задержки, увеличивается. При повторном применении VNS возникали ритмические колебания объема крови.
Эти сосудистые ритмы также оказались связаны с обучением. У мышей, у которых наблюдались более выраженные колебания объема крови, к пятому дню обучения результаты были, как правило, лучше. Это указывает на то, что изменения в сосудистой среде мозга могут быть связаны с долгосрочными эффектами стимуляции.
В будущем ученые планируют усовершенствовать протоколы стимуляции и более точно определить, каким образом взаимодействие между мозгом и организмом способствует долгосрочной пластичности. Детально изучая этот двусторонний канал связи, исследователи надеются лучше понять, как знания закрепляются в памяти надолго и как этот процесс можно было бы в будущем усилить.
Немного рекламы
Спасибо, что остаетесь с нами. Вам нравятся наши статьи? Хотите видеть больше интересных материалов? Поддержите нас, оформив заказ или порекомендовав знакомым, облачные VPS для разработчиков от $4.99, уникальный аналог entry-level серверов, который был придуман нами для Вас: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны варианты с RAID1 и RAID10, до 24 ядер и до 40GB DDR4).
Dell R730xd в 2 раза дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 - 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB - от $99! Читайте о том Как построить инфраструктуру корп. класса c применением серверов Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки?